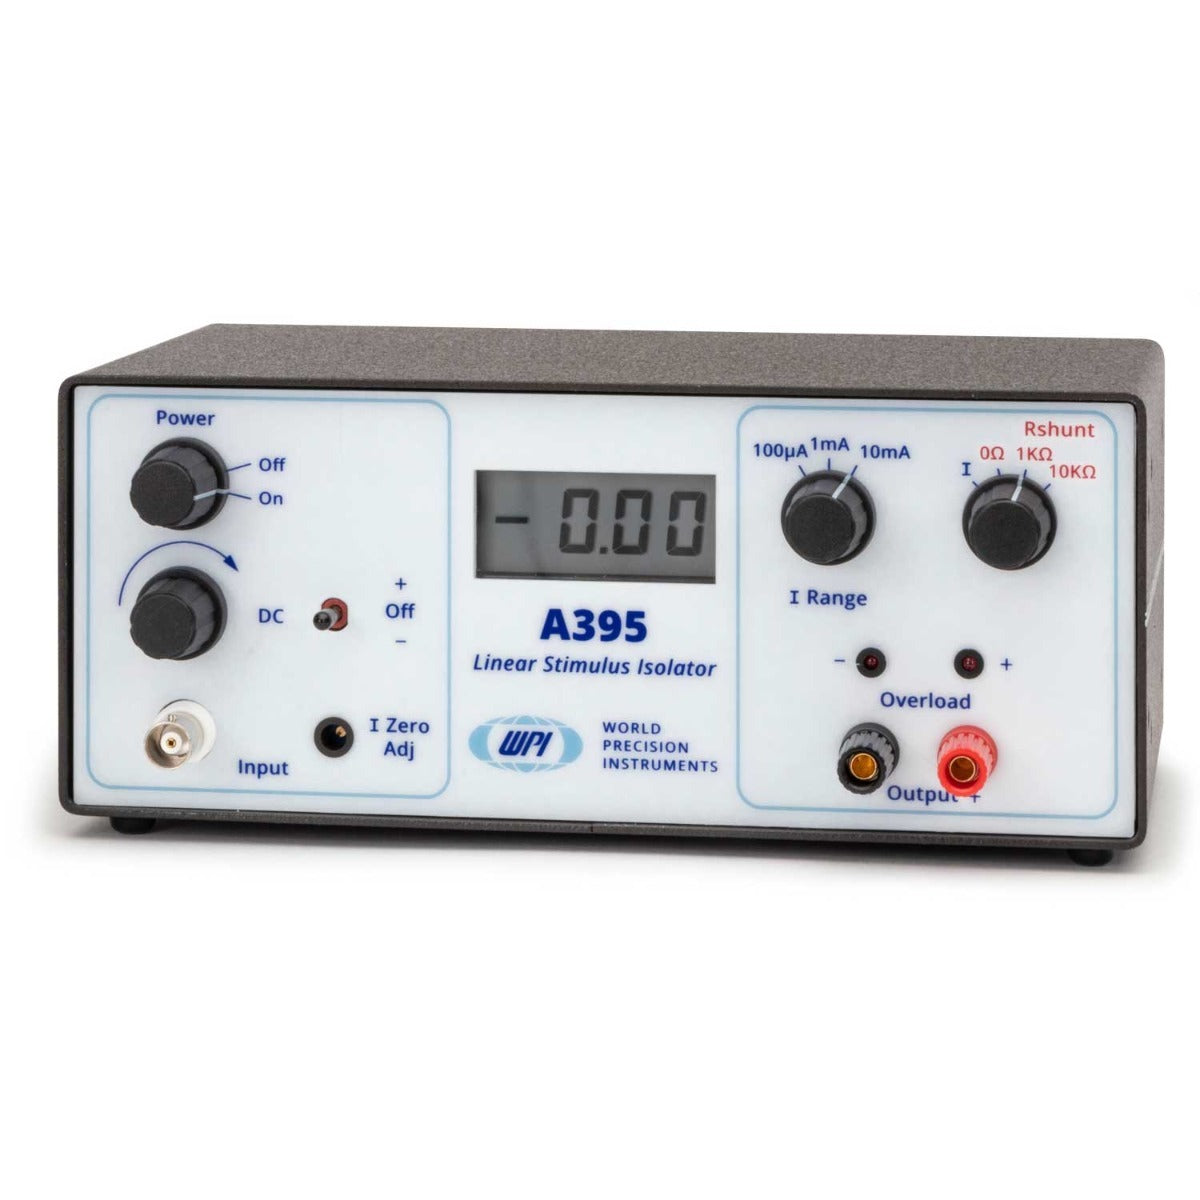
Isolatore di stimolo lineare

Passa alle informazioni sul prodotto

SYS-A395D


Tipo di batteria

Prezzi validi solo negli Stati Uniti, in Canada e a Porto Rico.

Modello A395 genera una corrente di uscita definita dall’utente, con forma d’onda CC, CA, a impulsi o combinata. Alimentato a batteria e isolato fotoelettricamente dalla tensione di ingresso, lo strumento rigenera correnti di uscita linearmente proporzionali alle forme d’onda di tensione analogiche fornite dal convertitore D/A o dal generatore di segnali.

ACCESSORI


Dettagli

Riproduce una forma d'onda programmata di qualsiasi forma o polarità

  • Genera una replica a corrente costante di forme d'onda analogiche
  • L'ampiezza della corrente di uscita è controllata in tensione
  • Tensione di ingresso da –10 V a +10 V
  • 3 intervalli di corrente da 100 μA a 10 mA
  • Resistenze di test integrate
  • Il display digitale mostra la corrente erogata per correnti costanti di durata adeguata
  • Regolazione dell'offset di uscita, intervallo di compliance ±70 V
  • Scegliere le batterie: NiMH con caricabatterie (A395RC), alcaline (SYS-A395D), NiMH (SYS-A395R)

Opzioni

N. parte Descrizione Tipo di batteria Caricabatterie incluso
A395RC A395R con caricabatterie A362 17 batterie ricaricabili NiMH da 9 V Sì
SYS-A395R Isolatore lineare di stimolazione 17 batterie ricaricabili NiMH da 9 V No
SYS-A395D Isolatore lineare di stimolazione 17 batterie alcaline da 9 V _


Vantaggi

  • L'ampiezza della corrente è controllata in tensione
  • Resistenze di test integrate
  • I LED di errore si accendono quando la corrente è inferiore a quella richiesta dalla tensione di controllo

Applicazioni

  • Neuroscienze

Tutti gli isolatori di stimolazione WPI sono progettati per fornire corrente costante, poiché la soglia di corrente (non la tensione) è il parametro quantitativo più riproducibile per la stimolazione di nervi e muscoli. Modello A395 eroga corrente in modo riproducibile dai terminali di uscita; l'ampiezza è determinata dal RANGE di corrente selezionato e dalla tensione di ingresso. L'ampiezza della corrente è «costante», cioè indipendente dalla resistenza del carico, purché il prodotto I x R (carico) non superi la tensione disponibile della batteria. Un indicatore visivo (i LED di compliance) segnala quando I x R raggiunge questo limite. Quando l'unità è fuori compliance, si accende uno dei due LED (contrassegnati con - e +), a seconda della direzione del flusso di corrente. Modello A395D può generare una tensione di 70 V o più ai terminali di USCITA. Si può essere certi che l'ampiezza della corrente corrisponda a quella impostata, purché la caduta di tensione sul carico (percorso degli elettrodi di stimolazione) non raggiunga il valore della tensione di alimentazione. I LED di compliance saranno quindi visibili. A questo punto si saprà che:

• È stata impostata una corrente eccessiva per un determinato carico oppure

• La resistenza tra gli elettrodi era troppo elevata oppure il circuito degli elettrodi era aperto.

Corrente di uscita definita dall'utente in varie forme

Modello A395 genera una forma d'onda della corrente in uscita definita dall'utente: CC, CA, impulsi e combinazioni. Alimentato a batterie e isolato fotoelettricamente dalla tensione di pilotaggio in ingresso, lo strumento rigenera correnti in uscita linearmente proporzionali alle forme d'onda analogiche fornite dal convertitore D/A o dal generatore di segnali (vedere lo schema qui sotto).

Il A395 è ideale per l'acquisizione dati e i generatori di stimolazione.

Erogazione di corrente per gli intervalli selezionati

Un ingresso di 10 V produce la corrente massima in uscita per l'intervallo di corrente selezionato (per esempio, 100 µA, 1 mA o 10 mA). I comandi sul pannello anteriore consentono di generare corrente continua. I segnali applicati esternamente possono essere sovrapposti simultaneamente (offset CC). Le spie di avviso indicano un circuito aperto o condizioni di corrente eccessiva.

Il display digitale mostra la corrente continua o la corrente media in uscita

Il display digitale indica la corrente continua misurata o la corrente media in uscita. Le spie di sovraccarico segnalano quando la tensione in uscita ha raggiunto il limite positivo o negativo di tensione di conformità.
a395io.jpg

NOTA: Non destinato all'uso umano.

Risorse

Specifiche

CORRENTE IN USCITA, Imax 3 intervalli: 100 μA, 1 mA e 10 mA
INTERVALLO DI TENSIONE IN USCITA ±70 V
LARGHEZZA DI BANDA IN USCITA 10 kHz (misurato su un carico R di 1 KΩ)
RESISTENZA DI INGRESSO >20 MΩ
TENSIONE DI INGRESSO @ Imax ±10 V
ERRORE DI LINEARITÀ INGRESSO/USCITA <0,5%
TEMPO DI SALITA E DISCESA 26 μs @ 10 KΩ
ALIMENTAZIONE: Modello A395D 17 batterie alcaline da 9 V
ALIMENTAZIONE: Modello A395R 17 batterie NiMH ricaricabili da 9 V
DIMENSIONI 6,5 x 4 x 3,5 in. (16 x 10 x 9 cm)
PESO DI SPEDIZIONE 4 lb. (1,8 kg)

Riferimenti

Chemla, S., Witharana, W. K. L., & McNaughton, B. L. (2016). Effetti spazio-temporali della stimolazione transcranica a corrente continua sull'attività evocata sensorialmente nella S 1 del ratto: uno studio pilota VSDI. Recuperato da https://www.semanticscholar.org/paper/Spatiotemporal-after-effects-of-transcranial-direct-Chemla-Witharana/ebfca5444c8b7c0133217e62756e75f4c0c727d5

Márquez-Ruiz, J., Ammann, C., Leal-Campanario, R., Ruffini, G., Gruart, A., & Delgado-García, J. M. (2016). La percezione tattile sintetica indotta dalla stimolazione transcranica a corrente alternata può sostituire lo stimolo sensoriale naturale nei conigli in attività. Scientific Reports, 6(1), 19753. https://doi.org/10.1038/srep19753

Kim, H. N., Jung, W. B., Kang, M. J., Im, G. H., Lee, J. H., & Choe, B.-Y. (2015). Variazioni del metabolismo del glucosio cerebrale nel cervello del ratto in seguito alla stimolazione elettrica della zampa anteriore a diverse frequenze. NeuroReport, 26(4), 197–205. https://doi.org/10.1097/WNR.0000000000000327

Madison, R. D., Robinson, G. A., Krarup, C., Moldovan, M., Li, Q., & Wilson, W. A. (2014). Elettroforesi in vitro ed elettrofisiologia in vivo del nervo periferico mediante stimolazione con campo DC. Journal of Neuroscience Methods, 225, 90–96. https://doi.org/10.1016/j.jneumeth.2014.01.018

Ali, M. M., Sellers, K. K., & Fröhlich, F. (2013). La stimolazione transcranica a corrente alternata modula l’attività delle reti corticali su larga scala tramite la risonanza di rete. The Journal of Neuroscience : The Official Journal of the Society for Neuroscience, 33(27), 11262–11275. https://doi.org/10.1523/JNEUROSCI.5867-12.2013

Ayata, C., Shin, H. K., Dileköz, E., Atochin, D. N., Kashiwagi, S., Eikermann-Haerter, K., & Huang, P. L. (2013). L’iperlipidemia compromette i riflessi cerebrovascolari e peggiora il deficit di perfusione ischemica. Journal of Cerebral Blood Flow & Metabolism, 33(6), 954–962. https://doi.org/10.1038/jcbfm.2013.38

Vastani, N., Seifert, B., Spahn, D. R., & Maurer, K. (2013). Sensibilità dei nervi afferenti sensoriali primari del ratto al magnesio. European Journal of Anaesthesiology, 30(1), 21–28. https://doi.org/10.1097/EJA.0b013e32835949ab

Jacob, S., Johansson, C., & Fridberger, A. (2013). Alterazioni indotte dal rumore nella meccanica cocleare, nell’elettromotilità e nell’amplificazione cocleare. Pflügers Archiv - European Journal of Physiology, 465(6), 907–917. https://doi.org/10.1007/s00424-012-1198-4

Pothmann, L., Wilkens, L. A., & Hofmann, M. H. (2012). Due modalità di elaborazione delle informazioni nel sistema elettrosensoriale del pesce spatola (Polyodon spathula). Journal of Comparative Physiology A, 198(1), 1–10. https://doi.org/10.1007/s00359-011-0681-2

Couchman, K., Grothe, B., & Felmy, F. (2010). I neuroni dell’oliva superiore mediale ricevono sorprendentemente pochi input eccitatori e inibitori, con intensità bilanciata e dinamiche a breve termine. Journal of Neuroscience, 30(50), 17111–17121. https://doi.org/10.1523/JNEUROSCI.1760-10.2010

Tai, C., Wang, J., Wang, X., Roppolo, J. R., & de Groat, W. C. (2007). Riflesso della minzione nei gatti con lesione cronica del midollo spinale indotto dalla stimolazione e dal blocco dei nervi pudendi. Neurourology and Urodynamics, 26(6), 879–886. https://doi.org/10.1002/nau.20430

Lang, P. M., Burgstahler, R., Haberberger, R. V, Sippel, W., & Grafe, P. (2005). Un peptide del cono blocca i recettori nicotinici degli assoni amielinici nei nervi umani. Neuroreport, 16(5), 479–483. Recuperato da http://www.ncbi.nlm.nih.gov/pubmed/15770155

Irnich, D., Tracey, D. J., Polten, J., Burgstahler, R., & Grafe, P. (2002). L’ATP stimola gli assoni periferici nell’uomo, nel ratto e nel topo: coinvolgimento differenziale dei recettori dell’adenosina A(2B) e dei recettori purinergici P2X. Neuroscience, 110(1), 123–129. Recuperato da http://www.ncbi.nlm.nih.gov/pubmed/11882377

Irnich, D., Burgstahler, R., Bostock, H., & Grafe, P. (2001). L’ATP agisce sia sugli assoni sia sulle cellule di Schwann delle fibre C amieliniche. Pain, 92(3), 343–350. Recuperato da http://www.ncbi.nlm.nih.gov/pubmed/11376907


Prodotti correlati

1 su 6