Se vend rapidement !
Procurez-vous le vôtre tant qu'il en reste.
Votre panier est vide
Continuer les achatsVotre panier
Total estimé
$0.00 USD
Livraison gratuite pour les commandes en ligne de plus de 50 $ ! (États-Unis uniquement. Certaines exclusions s'appliquent.) Livraison gratuite pour les commandes en ligne de plus de 50 $ ! (États-Unis uniquement. Certaines exclusions s'appliquent.)
Économisez sur EVOM™ avec les packs Corning® !
SYS-A395D
Impossible de charger la disponibilité du service de retrait
Prix valables uniquement aux États-Unis, au Canada et à Porto Rico.
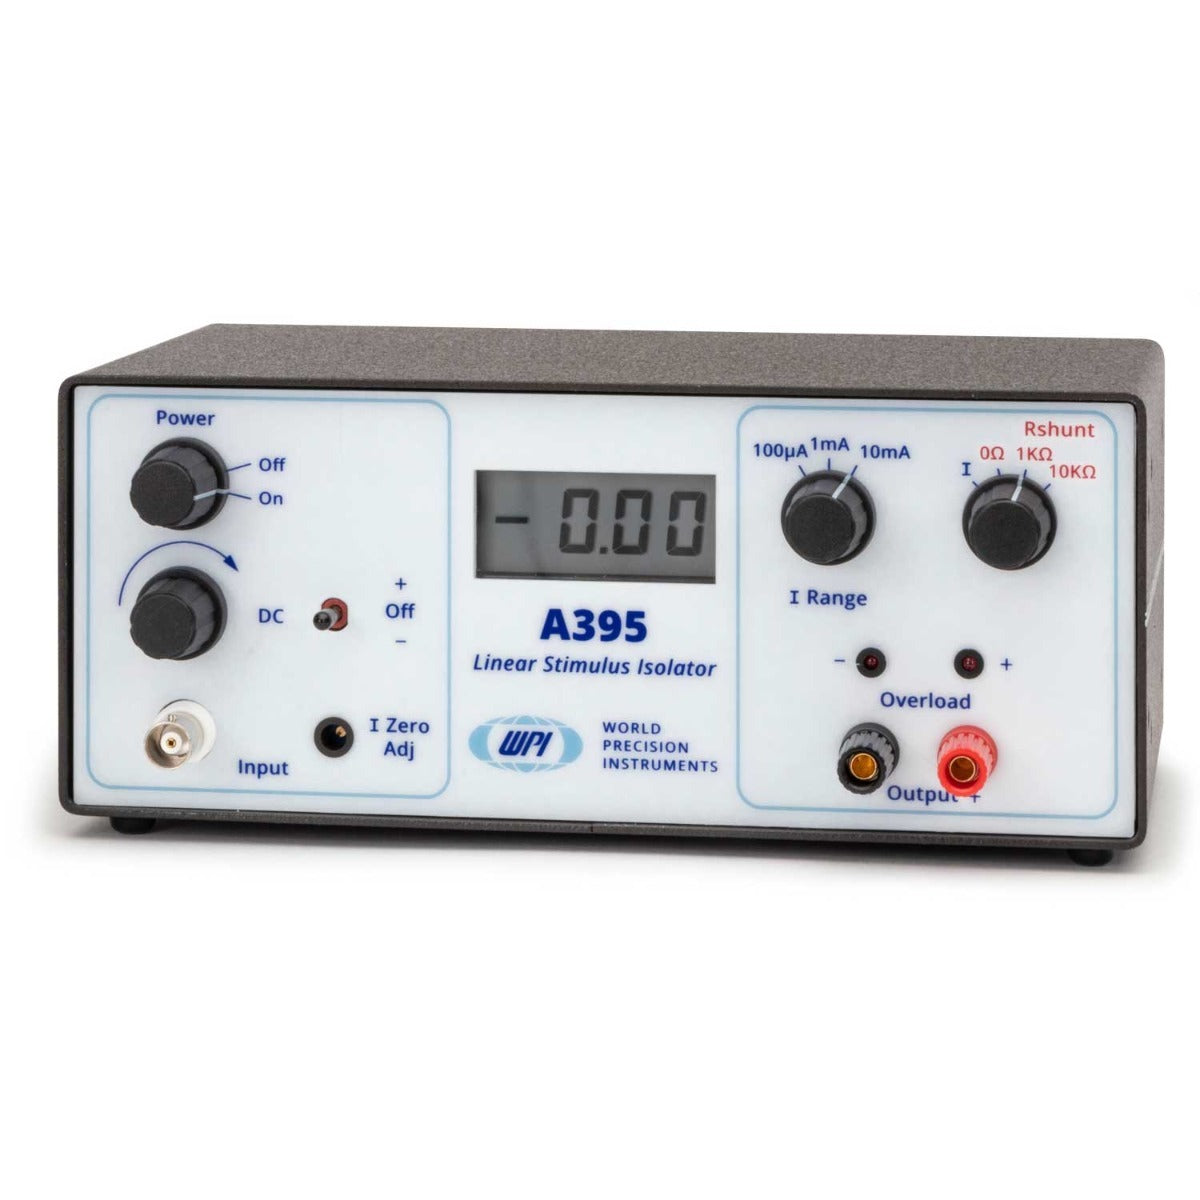
Modèle A395 génère un courant de sortie défini par l'utilisateur avec une forme d'onde ; continu, alternatif, impulsion et combinaisons. Fonctionnant sur batterie, photoélectriquement isolé de la tension d'entrée, l'instrument régénère des courants de sortie proportionnels linéairement aux formes d'onde analogiques fournies par votre convertisseur D/A ou générateur de signal.
| Référence | Description | Type de pile | Chargeur inclus |
| A395RC | A395R avec un chargeur de batterie A362 | 17 piles rechargeables NiMH de 9 V | Oui |
| SYS-A395R | Isolateur de stimulation linéaire | 17 piles rechargeables NiMH de 9 V | Non |
| SYS-A395D | Isolateur de stimulation linéaire | 17 piles alcalines de 9 V | _ |
Tous les isolateurs de stimulation WPI sont conçus pour fournir un courant constant, car le seuil de courant (et non de tension) est le paramètre quantitatif le plus reproductible pour la stimulation des nerfs et des muscles. Le modèle A395 fournit un courant reproductible à ses bornes de sortie ; son amplitude est déterminée par la plage de courant sélectionnée et la tension d’entrée. L’amplitude du courant est « constante », c’est-à-dire indépendante de la résistance de charge, à condition que le produit I x R (charge) ne dépasse pas la tension disponible de la batterie. Un indicateur visuel (les voyants de conformité) signale si I x R atteint cette limite. Lorsque l’appareil est hors conformité, l’un des deux voyants (marqués - et +) s’allume, selon le sens de circulation du courant. Le modèle A395D peut générer une tension de 70 V ou plus entre ses bornes de sortie. Vous pouvez être sûr que l’amplitude du courant correspond au réglage tant que la chute de tension aux bornes de la charge (circuit de l’électrode de stimulation) n’atteint pas la tension d’alimentation. Les voyants de conformité s’allument alors. Vous saurez donc que :
• Le courant réglé était trop élevé pour une charge donnée, ou
• La résistance entre les électrodes était trop élevée ou le circuit des électrodes était ouvert.
Le modèle A395 génère un courant de sortie défini par l’utilisateur, de différentes formes d’onde : continu, alternatif, impulsionnel et leurs combinaisons. Fonctionnant sur batterie et isolé photoélectriquement de la commande de tension d’entrée, l’instrument régénère des courants de sortie linéairement proportionnels aux formes d’onde de tension analogiques fournies par votre convertisseur N/A ou votre générateur de signaux (voir le schéma ci-dessous).
Le A395 convient parfaitement à l’acquisition de données et aux générateurs de stimulateurs.
Une entrée de 10 V produit le courant de sortie maximal pour la plage de courant sélectionnée (par exemple, 100 µA, 1 mA ou 10 mA). Les commandes du panneau avant permettent de générer un courant continu. Des signaux appliqués à l’extérieur peuvent être superposés simultanément (décalage continu). Les voyants d’avertissement signalent un circuit ouvert ou une surintensité.
L’afficheur numérique indique le courant continu mesuré ou le courant de sortie moyen. Les voyants de surcharge signalent lorsque la tension de sortie a atteint la limite positive ou négative de tension de conformité. 
REMARQUE : Non destiné à une utilisation humaine.
| COURANT DE SORTIE, Imax | 3 plages : 100 μA, 1 mA et 10 mA |
| PLAGE DE TENSION DE SORTIE | ±70 V |
| BANDE PASSANTE DE SORTIE | 10 kHz (mesurée aux bornes d’une charge de 1 KΩ) |
| RÉSISTANCE D’ENTRÉE | >20 MΩ |
| TENSION D’ENTRÉE À Imax | ±10 V |
| ERREUR DE LINÉARITÉ ENTRÉE/SORTIE | <0,5 % |
| TEMPS DE MONTÉE ET DE DESCENTE | 26 μs à 10 KΩ |
| ALIMENTATION : modèle A395D | 17 piles alcalines de 9 V |
| ALIMENTATION : modèle A395R | 17 piles rechargeables NiMH de 9 V |
| DIMENSIONS | 6,5 x 4 x 3,5 po (16 x 10 x 9 cm) |
| POIDS D’EXPÉDITION | 4 lb. (1,8 kg) |
Chemla, S., Witharana, W. K. L., & McNaughton, B. L. (2016). Effets rémanents spatio-temporels de la stimulation transcrânienne à courant continu sur l’activité évoquée par un stimulus sensoriel dans le cortex S 1 du rat : étude pilote VSDI. Consulté à https://www.semanticscholar.org/paper/Spatiotemporal-after-effects-of-transcranial-direct-Chemla-Witharana/ebfca5444c8b7c0133217e62756e75f4c0c727d5
Márquez-Ruiz, J., Ammann, C., Leal-Campanario, R., Ruffini, G., Gruart, A., & Delgado-García, J. M. (2016). La perception tactile synthétique induite par une stimulation transcrânienne à courant alternatif peut remplacer un stimulus sensoriel naturel chez des lapins en comportement libre. Scientific Reports, 6(1), 19753. https://doi.org/10.1038/srep19753
Kim, H. N., Jung, W. B., Kang, M. J., Im, G. H., Lee, J. H., & Choe, B.-Y. (2015). Modifications du métabolisme cérébral du glucose dans le cerveau du rat lors d’une stimulation électrique de la patte avant à différentes fréquences. NeuroReport, 26(4), 197–205. https://doi.org/10.1097/WNR.0000000000000327
Madison, R. D., Robinson, G. A., Krarup, C., Moldovan, M., Li, Q., & Wilson, W. A. (2014). Électrophorèse in vitro et électrophysiologie in vivo du nerf périphérique par stimulation en champ continu. Journal of Neuroscience Methods, 225, 90–96. https://doi.org/10.1016/j.jneumeth.2014.01.018
Ali, M. M., Sellers, K. K., & Fröhlich, F. (2013). La stimulation transcrânienne par courant alternatif module l’activité des réseaux corticaux à grande échelle par résonance des réseaux. The Journal of Neuroscience : The Official Journal of the Society for Neuroscience, 33(27), 11262–11275. https://doi.org/10.1523/JNEUROSCI.5867-12.2013
Ayata, C., Shin, H. K., Dileköz, E., Atochin, D. N., Kashiwagi, S., Eikermann-Haerter, K., & Huang, P. L. (2013). L’hyperlipidémie perturbe les réflexes cérébrovasculaires et aggrave le déficit de perfusion ischémique. Journal of Cerebral Blood Flow & Metabolism, 33(6), 954–962. https://doi.org/10.1038/jcbfm.2013.38
Vastani, N., Seifert, B., Spahn, D. R., & Maurer, K. (2013). Sensibilité des nerfs afférents sensoriels primaires du rat au magnésium. European Journal of Anaesthesiology, 30(1), 21–28. https://doi.org/10.1097/EJA.0b013e32835949ab
Jacob, S., Johansson, C., & Fridberger, A. (2013). Altérations induites par le bruit dans la mécanique cochléaire, l’électromotilité et l’amplification cochléaire. Pflügers Archiv - European Journal of Physiology, 465(6), 907–917. https://doi.org/10.1007/s00424-012-1198-4
Pothmann, L., Wilkens, L. A., & Hofmann, M. H. (2012). Deux modes de traitement de l’information dans le système électrosensoriel du polyodon (Polyodon spathula). Journal of Comparative Physiology A, 198(1), 1–10. https://doi.org/10.1007/s00359-011-0681-2
Couchman, K., Grothe, B., & Felmy, F. (2010). Les neurones de l’olive supérieure médiane reçoivent étonnamment peu d’entrées excitatrices et inhibitrices, d’intensité équilibrée et de dynamique à court terme. Journal of Neuroscience, 30(50), 17111–17121. https://doi.org/10.1523/JNEUROSCI.1760-10.2010
Tai, C., Wang, J., Wang, X., Roppolo, J. R., & de Groat, W. C. (2007). Réflexe mictionnel chez des chats atteints de lésions chroniques de la moelle épinière, induit par la stimulation et le blocage des nerfs pudendaux. Neurourology and Urodynamics, 26(6), 879–886. https://doi.org/10.1002/nau.20430
Lang, P. M., Burgstahler, R., Haberberger, R. V, Sippel, W., & Grafe, P. (2005). Un peptide du cône bloque les récepteurs nicotiniques des axones non myélinisés dans les nerfs humains. Neuroreport, 16(5), 479–483. Consulté à l’adresse http://www.ncbi.nlm.nih.gov/pubmed/15770155
Irnich, D., Tracey, D. J., Polten, J., Burgstahler, R., & Grafe, P. (2002). L’ATP stimule les axones périphériques chez l’humain, le rat et la souris - implication différentielle des récepteurs adénosiniques A(2B) et purinergiques P2X. Neuroscience, 110(1), 123–129. Consulté à l’adresse http://www.ncbi.nlm.nih.gov/pubmed/11882377
Irnich, D., Burgstahler, R., Bostock, H., & Grafe, P. (2001). L’ATP agit à la fois sur les axones et les cellules de Schwann des fibres C non myélinisées. Pain, 92(3), 343–350. Consulté à l’adresse http://www.ncbi.nlm.nih.gov/pubmed/11376907

5470
13347
DRL
Se vend rapidement !
Procurez-vous le vôtre tant qu'il en reste.