Linearer Stimulus-Isolator

Zum Produktinformationen springen

SYS-A395D


Batterietyp

Preise gelten nur in den USA, Kanada und Puerto Rico.

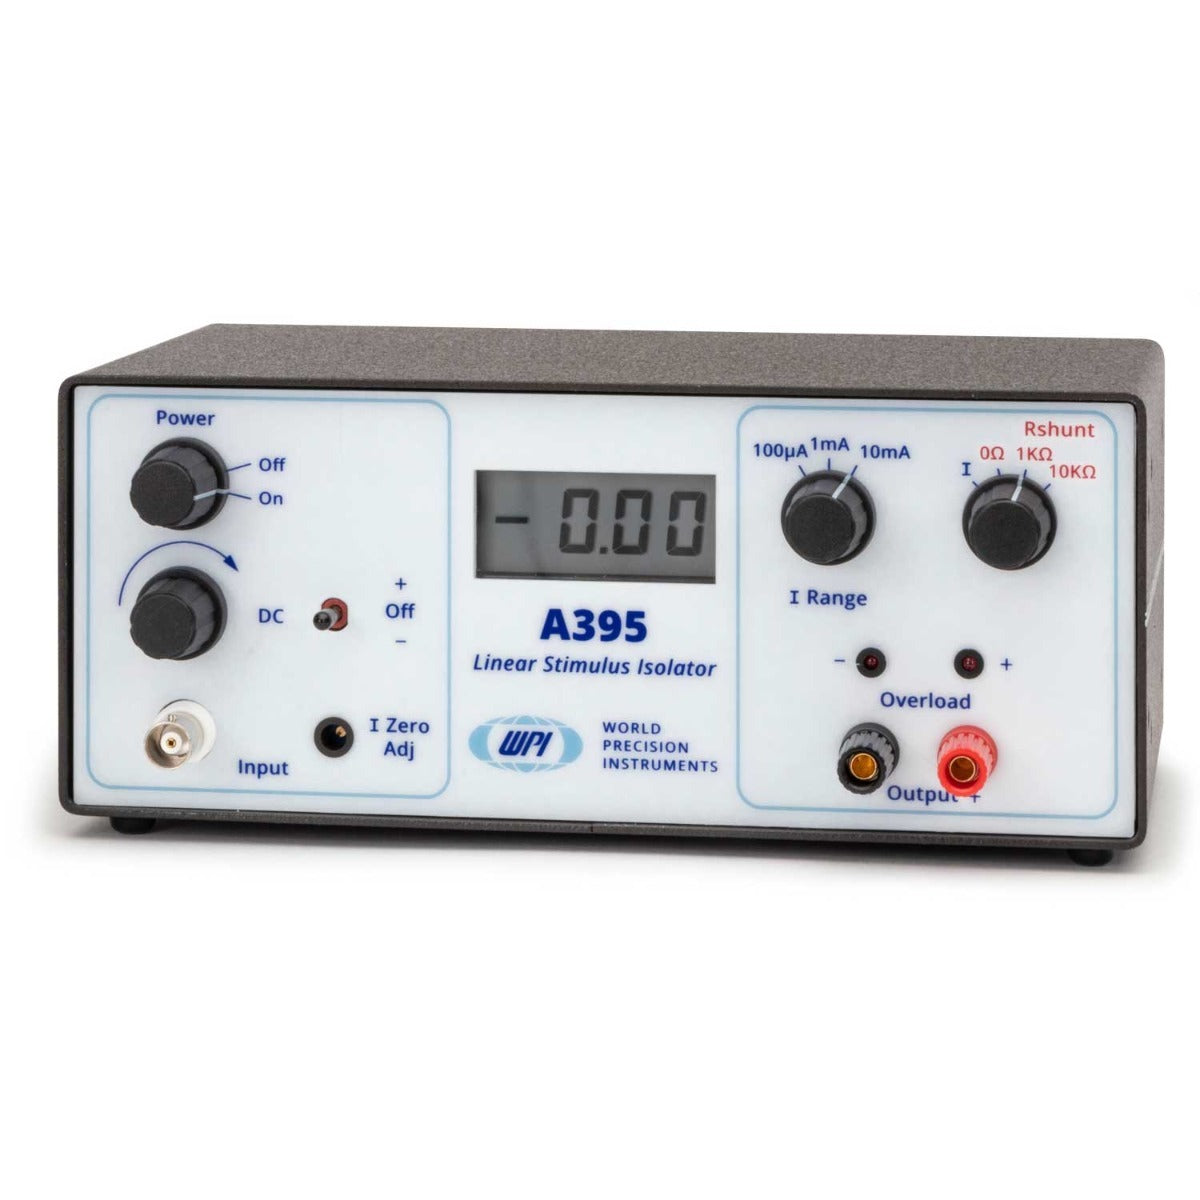
Das Modell A395 erzeugt einen benutzerdefinierten Ausgangsstrom mit Wellenform; Gleichstrom, Wechselstrom, Puls und Kombinationen. Batteriebetrieben, photoelektrisch vom Eingangsspannungsantrieb isoliert, regeneriert das Gerät Ausgangsströme, die linear proportional zu den analogen Spannungswellenformen sind, die von Ihrem D/A-Wandler oder Signalgenerator bereitgestellt werden.

ZUBEHÖR


Einzelheiten

Reproduziert eine programmierte Wellenform beliebiger Form oder Polarität

  • Erzeugt eine konstante Stromreplik analoger Wellenformen
  • Die Amplitude des Ausgangsstroms wird spannungsgesteuert
  • Eingangsspannung von –10 V bis +10 V
  • 3 Strombereiche von 100 μA bis 10 mA
  • Eingebaute Prüfwiderstände
  • Digitalanzeige zeigt den abgegebenen Strom bei ausreichend langer Dauer nicht veränderlicher Ströme an
  • Ausgangsoffset-Einstellung, Compliance-Bereich ±70 V
  • Batterien auswählen: NiMH mit Ladegerät (A395RC), Alkaline (SYS-A395D), NiMH (SYS-A395R)

Optionen

Teilenummer Beschreibung Batterietyp Ladegerät enthalten
A395RC A395R mit einem A362-Batterieladegerät 17 wiederaufladbare 9-V-NiMH-Batterien Ja
SYS-A395R Linearer Stimulusisolator 17 wiederaufladbare 9-V-NiMH-Batterien Nein
SYS-A395D Linearer Stimulusisolator 17 9-V-Alkalibatterien _


Vorteile

  • Die Stromamplitude wird spannungsgesteuert
  • Eingebaute Prüfwiderstände
  • Fehler-LEDs leuchten, wenn der Strom niedriger ist als durch die Steuerspannung vorgegeben

Anwendungen

  • Neurowissenschaften

Alle WPI-Stimulusisolatoren sind für die Lieferung eines konstanten Stroms ausgelegt, da die Stromschwelle (nicht die Spannung) der quantitativ am besten reproduzierbare Parameter für die Stimulation von Nerven und Muskeln ist. Modell A395 gibt über seine Ausgangsklemmen reproduzierbar Strom ab; die Amplitude wird durch den gewählten Strombereich und die Eingangsspannung bestimmt. Die Stromamplitude ist „konstant“, d. h. unabhängig vom Lastwiderstand, sofern das Produkt I x R (Last) die verfügbare Batteriespannung nicht überschreitet. Eine visuelle Anzeige (die Compliance-LEDs) zeigt an, ob I x R diesen Grenzwert erreicht. Liegt das Gerät außerhalb des Compliance-Bereichs, leuchtet je nach Stromrichtung eine der beiden mit - und + gekennzeichneten LEDs. Modell A395D kann an seinen AUSGANGSKlemmen eine Spannung von 70 V oder mehr erzeugen. Sie können sicher sein, dass die Stromamplitude dem eingestellten Wert entspricht, solange der Spannungsabfall an der Last (dem Stimulations-Elektrodenpfad) nicht die Versorgungsspannung erreicht. Dann leuchten die Compliance-LEDs. Daran erkennen Sie:

• Für eine bestimmte Last wurde ein zu hoher Strom eingestellt oder

• Der Widerstand zwischen den Elektroden war zu hoch oder der Elektrodenstromkreis war unterbrochen.

Benutzerdefinierter Ausgangsstrom mit verschiedenen Formen

Modell A395 erzeugt einen benutzerdefinierten Ausgangsstrom mit beliebiger Wellenform: Gleichstrom, Wechselstrom, Impulse und Kombinationen. Das batteriebetriebene Gerät ist photoelektrisch vom Eingangsspannungsantrieb isoliert und erzeugt Ausgangsströme, die linear proportional zu den analogen Spannungswellenformen sind, die von Ihrem D/A-Wandler oder Signalgenerator bereitgestellt werden (siehe Diagramm unten).

Der A395 eignet sich ideal für Datenerfassung und Stimulatoren.

Stromzufuhr für ausgewählte Bereiche

Eine Eingangsspannung von 10 V erzeugt den maximalen Ausgangsstrom für den ausgewählten Strombereich (zum Beispiel 100 µA, 1 mA oder 10 mA). Über die Bedienelemente an der Frontplatte lässt sich Gleichstrom erzeugen. Extern angelegte Signale können gleichzeitig überlagert werden (DC-Offset). Warnanzeigen signalisieren einen offenen Stromkreis oder übermäßigen Strom.

Digitales Messgerät zeigt Gleichstrom oder Durchschnittsausgang an

Das digitale Anzeigemessgerät zeigt den gemessenen Gleichstrom oder den durchschnittlichen Ausgangsstrom an. Überlastanzeigen signalisieren, wenn die Ausgangsspannung die positive oder negative Compliance-Spannungsgrenze erreicht hat.
a395io.jpg

HINWEIS: Nicht für den Gebrauch am Menschen bestimmt.
Ressourcen

Spezifikationen

AUSGANGSSTROM, Imax 3 Bereiche: 100 μA, 1 mA und 10 mA
AUSGANGSSPANNUNGSBEREICH ±70 V
AUSGANGSBANDBREITE 10 kHz (gemessen an einem Lastwiderstand R von 1 KΩ)
EINGANGSWIDERSTAND >20 MΩ
EINGANGSSPANNUNG BEI Imax ±10 V
LINEARITÄTSFEHLER AM EIN- UND AUSGANG <0,5%
ANSTIEGS- UND ABFALLZEIT 26 μs bei 10 KΩ
STROMVERSORGUNG: Modell A395D 17 alkalische 9-V-Batterien
STROMVERSORGUNG: Modell A395R 17 wiederaufladbare 9-V-NiMH-Batterien
ABMESSUNGEN 6,5 x 4 x 3,5 Zoll (16 x 10 x 9 cm)
VERSANDGEWICHT 4 lb. (1,8 kg)

Literaturverzeichnis

Chemla, S., Witharana, W. K. L., & McNaughton, B. L. (2016). Räumlich-zeitliche Nachwirkungen der transkraniellen Gleichstromstimulation auf sensorisch ausgelöste Aktivität in Ratten-S 1 : Eine VSDI-Pilotstudie. Abgerufen von https://www.semanticscholar.org/paper/Spatiotemporal-after-effects-of-transcranial-direct-Chemla-Witharana/ebfca5444c8b7c0133217e62756e75f4c0c727d5

Márquez-Ruiz, J., Ammann, C., Leal-Campanario, R., Ruffini, G., Gruart, A., & Delgado-García, J. M. (2016). Durch transkranielle Wechselstromstimulation hervorgerufene synthetische taktile Wahrnehmung kann bei verhaltensaktiven Kaninchen natürliche sensorische Reize ersetzen. Scientific Reports, 6(1), 19753. https://doi.org/10.1038/srep19753

Kim, H. N., Jung, W. B., Kang, M. J., Im, G. H., Lee, J. H., & Choe, B.-Y. (2015). Veränderungen des Glukosestoffwechsels im Rattengehirn bei elektrischer Stimulation der Vorderpfote mit unterschiedlichen Frequenzen. NeuroReport, 26(4), 197–205. https://doi.org/10.1097/WNR.0000000000000327

Madison, R. D., Robinson, G. A., Krarup, C., Moldovan, M., Li, Q., & Wilson, W. A. (2014). In-vitro-Elektrophorese und In-vivo-Elektrophysiologie peripherer Nerven mittels DC-Feldstimulation. Journal of Neuroscience Methods, 225, 90–96. https://doi.org/10.1016/j.jneumeth.2014.01.018

Ali, M. M., Sellers, K. K., & Fröhlich, F. (2013). Transkranielle Wechselstromstimulation moduliert die Aktivität großräumiger kortikaler Netzwerke durch Netzwerkresonanz. The Journal of Neuroscience : The Official Journal of the Society for Neuroscience, 33(27), 11262–11275. https://doi.org/10.1523/JNEUROSCI.5867-12.2013

Ayata, C., Shin, H. K., Dileköz, E., Atochin, D. N., Kashiwagi, S., Eikermann-Haerter, K., & Huang, P. L. (2013). Hyperlipidämie stört zerebrovaskuläre Reflexe und verschlimmert den ischämischen Perfusionsdefekt. Journal of Cerebral Blood Flow & Metabolism, 33(6), 954–962. https://doi.org/10.1038/jcbfm.2013.38

Vastani, N., Seifert, B., Spahn, D. R., & Maurer, K. (2013). Empfindlichkeit primärer sensorischer Afferenzen bei Ratten gegenüber Magnesium. European Journal of Anaesthesiology, 30(1), 21–28. https://doi.org/10.1097/EJA.0b013e32835949ab

Jacob, S., Johansson, C., & Fridberger, A. (2013). Lärmbedingte Veränderungen der Cochlea-Mechanik, Elektromotilität und cochleären Verstärkung. Pflügers Archiv - European Journal of Physiology, 465(6), 907–917. https://doi.org/10.1007/s00424-012-1198-4

Pothmann, L., Wilkens, L. A., & Hofmann, M. H. (2012). Zwei Modi der Informationsverarbeitung im elektrosensorischen System des Löffelstörs (Polyodon spathula). Journal of Comparative Physiology A, 198(1), 1–10. https://doi.org/10.1007/s00359-011-0681-2

Couchman, K., Grothe, B., & Felmy, F. (2010). Neuronen des medialen oberen Olivenkomplexes erhalten überraschend wenige exzitatorische und inhibitorische Eingänge mit ausgewogener Stärke und kurzfristiger Dynamik. Journal of Neuroscience, 30(50), 17111–17121. https://doi.org/10.1523/JNEUROSCI.1760-10.2010

Tai, C., Wang, J., Wang, X., Roppolo, J. R., & de Groat, W. C. (2007). Der Entleerungsreflex bei Katzen mit chronischer Rückenmarksverletzung wird durch Stimulation und Blockade der Pudendusnerven ausgelöst. Neurourology and Urodynamics, 26(6), 879–886. https://doi.org/10.1002/nau.20430

Lang, P. M., Burgstahler, R., Haberberger, R. V, Sippel, W., & Grafe, P. (2005). Ein Conus-Peptid blockiert nikotinische Rezeptoren unmyelinisierter Axone in menschlichen Nerven. Neuroreport, 16(5), 479–483. Abgerufen von http://www.ncbi.nlm.nih.gov/pubmed/15770155

Irnich, D., Tracey, D. J., Polten, J., Burgstahler, R., & Grafe, P. (2002). ATP stimuliert periphere Axone bei Menschen, Ratten und Mäusen – unterschiedliche Beteiligung von A(2B)-Adenosin- und P2X-purinergen Rezeptoren. Neuroscience, 110(1), 123–129. Abgerufen von http://www.ncbi.nlm.nih.gov/pubmed/11882377

Irnich, D., Burgstahler, R., Bostock, H., & Grafe, P. (2001). ATP beeinflusst sowohl Axone als auch Schwann-Zellen unmyelinisierter C-Fasern. Pain, 92(3), 343–350. Abgerufen von http://www.ncbi.nlm.nih.gov/pubmed/11376907


Verwandte Produkte

1 von 6