¡Se está vendiendo rápido!
Consigue el tuyo mientras puedas.
Tu carrito esta vacío
Seguir comprandoTu carrito
Total estimado
$0.00 USD
¡Envío gratis en pedidos web superiores a $50! (Solo EE. UU. Algunas exclusiones.) ¡Envío gratis en pedidos web superiores a $50! (Solo EE. UU. Algunas exclusiones.)
Ahorra en EVOM™ con los paquetes de Corning®!
SYS-A395D
No se pudo cargar la disponibilidad de retiro
Precios válidos solo en EE. UU., Canadá y Puerto Rico.
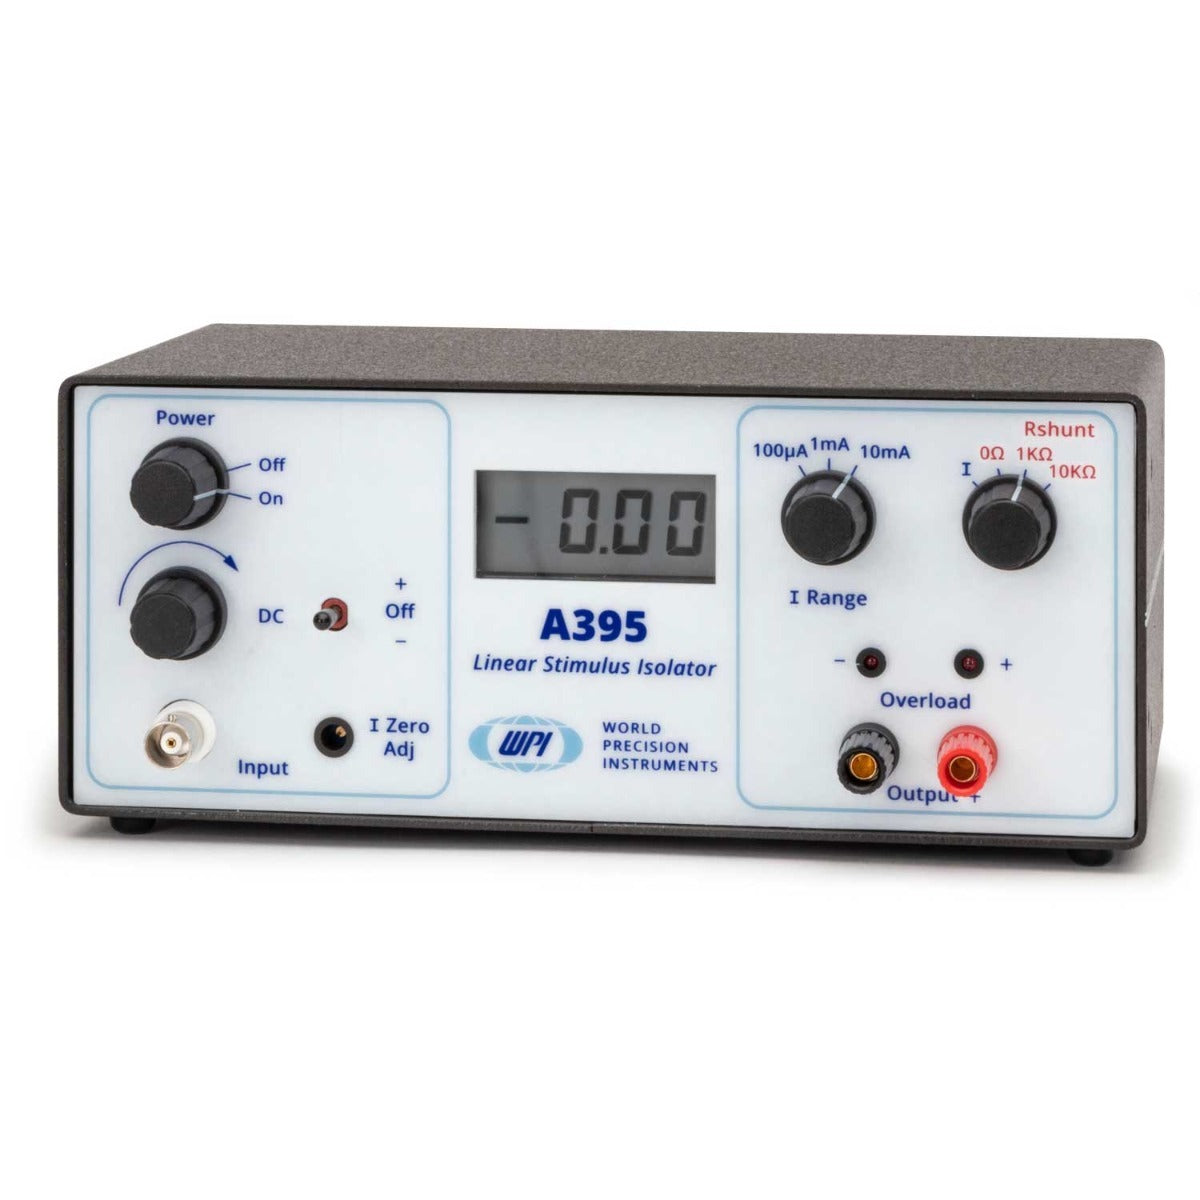
Modelo A395 genera una corriente de salida definida por el usuario con forma de onda; continua, alterna, pulsos y combinaciones. Funciona con batería, fotoeléctricamente aislado de la tensión de entrada, el instrumento regenera corrientes de salida que son linealmente proporcionales a las formas de onda de voltaje analógico proporcionadas por su convertidor D/A o generador de señales.
| N.º de pieza | Descripción | Tipo de batería | Incluye cargador |
| A395RC | A395R con cargador de baterías A362 | 17 baterías recargables NiMH de 9 V | Sí |
| SYS-A395R | Aislador lineal de estímulos | 17 baterías recargables NiMH de 9 V | No |
| SYS-A395D | Aislador lineal de estímulos | 17 baterías alcalinas de 9 V | _ |
Todos los aisladores de estímulos de WPI están diseñados para suministrar corriente constante, porque el umbral de corriente (no el voltaje) es el parámetro más reproducible cuantitativamente para la estimulación de nervios y músculos. El modelo A395 suministra corriente de forma reproducible desde sus terminales de salida; la amplitud está determinada por el RANGO de corriente seleccionado y el voltaje de entrada. La amplitud de la corriente es «constante», es decir, independiente de la resistencia de carga, siempre que el producto I x R (carga) no supere el voltaje disponible de la batería. Un indicador visual (los LED de cumplimiento) muestra si I x R alcanza este límite. Cuando la unidad está fuera del rango de cumplimiento, se enciende uno de los dos LED (marcados - y +), según la dirección en la que fluya la corriente. El modelo A395D puede generar un voltaje de 70 V o más entre sus terminales de SALIDA. Puede tener la certeza de que la amplitud de la corriente es la seleccionada siempre que la caída de voltaje en la carga (trayecto del electrodo de estímulo) no alcance la magnitud del voltaje de alimentación. En ese caso, se encenderán los LED de cumplimiento. Entonces, sabrá que:
• Se seleccionó demasiada corriente para una carga determinada o
• La resistencia entre electrodos era demasiado alta o el circuito del electrodo estaba abierto.
El modelo A395 genera una corriente de salida definida por el usuario con distintas formas de onda: CC, CA, pulsos y combinaciones. Funciona con baterías y está aislado fotoeléctricamente de la unidad de accionamiento de voltaje de entrada; el instrumento regenera corrientes de salida linealmente proporcionales a las formas de onda de voltaje analógicas proporcionadas por su convertidor D/A o generador de señales (véase el diagrama a continuación).
El A395 es ideal para la adquisición de datos y los generadores de estimulación.
Una entrada de 10 V produce la corriente de salida máxima para el rango de corriente seleccionado. (Por ejemplo, 100 µA, 1 mA o 10 mA) Los controles del panel frontal permiten generar corriente continua. Las señales aplicadas externamente pueden superponerse simultáneamente (desplazamiento de CC). Las luces de advertencia indican un circuito abierto o condiciones de corriente excesiva.
El medidor digital muestra la corriente continua medida o la corriente de salida promedio. Las luces de sobrecarga indican cuándo el voltaje de salida ha alcanzado el límite del voltaje de cumplimiento positivo o negativo. 
NOTA: No está diseñado para uso humano.
| CORRIENTE DE SALIDA, Imax | 3 rangos: 100 μA, 1 mA y 10 mA |
| RANGO DE VOLTAJE DE SALIDA | ±70 V |
| ANCHO DE BANDA DE SALIDA | 10 kHz (medido a través de una carga R de 1 KΩ) |
| RESISTENCIA DE ENTRADA | >20 MΩ |
| VOLTAJE DE ENTRADA A Imax | ±10 V |
| ERROR DE LINEALIDAD DE ENTRADA/SALIDA | <0,5% |
| TIEMPO DE SUBIDA Y BAJADA | 26 μs a 10 KΩ |
| ALIMENTACIÓN: Modelo A395D | 17 baterías alcalinas de 9 V |
| ALIMENTACIÓN: Modelo A395R | 17 baterías recargables NiMH de 9 V |
| DIMENSIONES | 6,5 x 4 x 3,5 in. (16 x 10 x 9 cm) |
| PESO DE ENVÍO | 4 lb. (1,8 kg) |
Chemla, S., Witharana, W. K. L., & McNaughton, B. L. (2016). Efectos posteriores espaciotemporales de la estimulación transcraneal por corriente continua sobre la actividad evocada sensorial en S 1 de rata: estudio piloto de VSDI. Consultado en https://www.semanticscholar.org/paper/Spatiotemporal-after-effects-of-transcranial-direct-Chemla-Witharana/ebfca5444c8b7c0133217e62756e75f4c0c727d5
Márquez-Ruiz, J., Ammann, C., Leal-Campanario, R., Ruffini, G., Gruart, A., & Delgado-García, J. M. (2016). La percepción táctil sintética inducida por estimulación transcraneal de corriente alterna puede sustituir a los estímulos sensoriales naturales en conejos en actividad. Scientific Reports, 6(1), 19753. https://doi.org/10.1038/srep19753
Kim, H. N., Jung, W. B., Kang, M. J., Im, G. H., Lee, J. H., & Choe, B.-Y. (2015). Cambios en el metabolismo de la glucosa cerebral en el cerebro de rata tras la estimulación eléctrica de la pata delantera a distintas frecuencias. NeuroReport, 26(4), 197–205. https://doi.org/10.1097/WNR.0000000000000327
Madison, R. D., Robinson, G. A., Krarup, C., Moldovan, M., Li, Q., & Wilson, W. A. (2014). Electroforesis in vitro y electrofisiología in vivo de nervios periféricos mediante estimulación con campo de corriente continua. Journal of Neuroscience Methods, 225, 90–96. https://doi.org/10.1016/j.jneumeth.2014.01.018
Ali, M. M., Sellers, K. K., & Fröhlich, F. (2013). La estimulación transcraneal con corriente alterna modula la actividad de redes corticales a gran escala mediante la resonancia de red. The Journal of Neuroscience : The Official Journal of the Society for Neuroscience, 33(27), 11262–11275. https://doi.org/10.1523/JNEUROSCI.5867-12.2013
Ayata, C., Shin, H. K., Dileköz, E., Atochin, D. N., Kashiwagi, S., Eikermann-Haerter, K., & Huang, P. L. (2013). La hiperlipidemia altera los reflejos cerebrovasculares y agrava el defecto de perfusión isquémica. Journal of Cerebral Blood Flow & Metabolism, 33(6), 954–962. https://doi.org/10.1038/jcbfm.2013.38
Vastani, N., Seifert, B., Spahn, D. R., & Maurer, K. (2013). Sensibilidad de los nervios aferentes sensoriales primarios de rata al magnesio. European Journal of Anaesthesiology, 30(1), 21–28. https://doi.org/10.1097/EJA.0b013e32835949ab
Jacob, S., Johansson, C., & Fridberger, A. (2013). Alteraciones inducidas por el ruido en la mecánica coclear, la electromotilidad y la amplificación coclear. Pflügers Archiv - European Journal of Physiology, 465(6), 907–917. https://doi.org/10.1007/s00424-012-1198-4
Pothmann, L., Wilkens, L. A., & Hofmann, M. H. (2012). Dos modos de procesamiento de la información en el sistema electrosensorial del pez espátula (Polyodon spathula). Journal of Comparative Physiology A, 198(1), 1–10. https://doi.org/10.1007/s00359-011-0681-2
Couchman, K., Grothe, B., & Felmy, F. (2010). Las neuronas de la oliva superior medial reciben sorprendentemente pocas aferencias excitadoras e inhibidoras, con fuerzas equilibradas y dinámica a corto plazo. Journal of Neuroscience, 30(50), 17111–17121. https://doi.org/10.1523/JNEUROSCI.1760-10.2010
Tai, C., Wang, J., Wang, X., Roppolo, J. R., & de Groat, W. C. (2007). Reflejo miccional en gatos con lesión medular crónica inducido mediante la estimulación y el bloqueo de los nervios pudendos. Neurourology and Urodynamics, 26(6), 879–886. https://doi.org/10.1002/nau.20430
Lang, P. M., Burgstahler, R., Haberberger, R. V, Sippel, W., & Grafe, P. (2005). Un péptido de cono bloquea los receptores nicotínicos de los axones amielínicos en los nervios humanos. Neuroreport, 16(5), 479–483. Recuperado de http://www.ncbi.nlm.nih.gov/pubmed/15770155
Irnich, D., Tracey, D. J., Polten, J., Burgstahler, R., & Grafe, P. (2002). El ATP estimula los axones periféricos en humanos, ratas y ratones: participación diferencial de los receptores de adenosina A(2B) y purinérgicos P2X. Neuroscience, 110(1), 123–129. Recuperado de http://www.ncbi.nlm.nih.gov/pubmed/11882377
Irnich, D., Burgstahler, R., Bostock, H., & Grafe, P. (2001). El ATP afecta tanto a los axones como a las células de Schwann de las fibras C amielínicas. Pain, 92(3), 343–350. Recuperado de http://www.ncbi.nlm.nih.gov/pubmed/11376907

5470
13347
DRL
¡Se está vendiendo rápido!
Consigue el tuyo mientras puedas.